La vida como doble punto fijo
Los sistemas vivos no son puntos fijos en el sentido ingenuo sino atractores robustos y máquinas que se autorreproducen, cuya descripción codificada participa en su propia continuación.
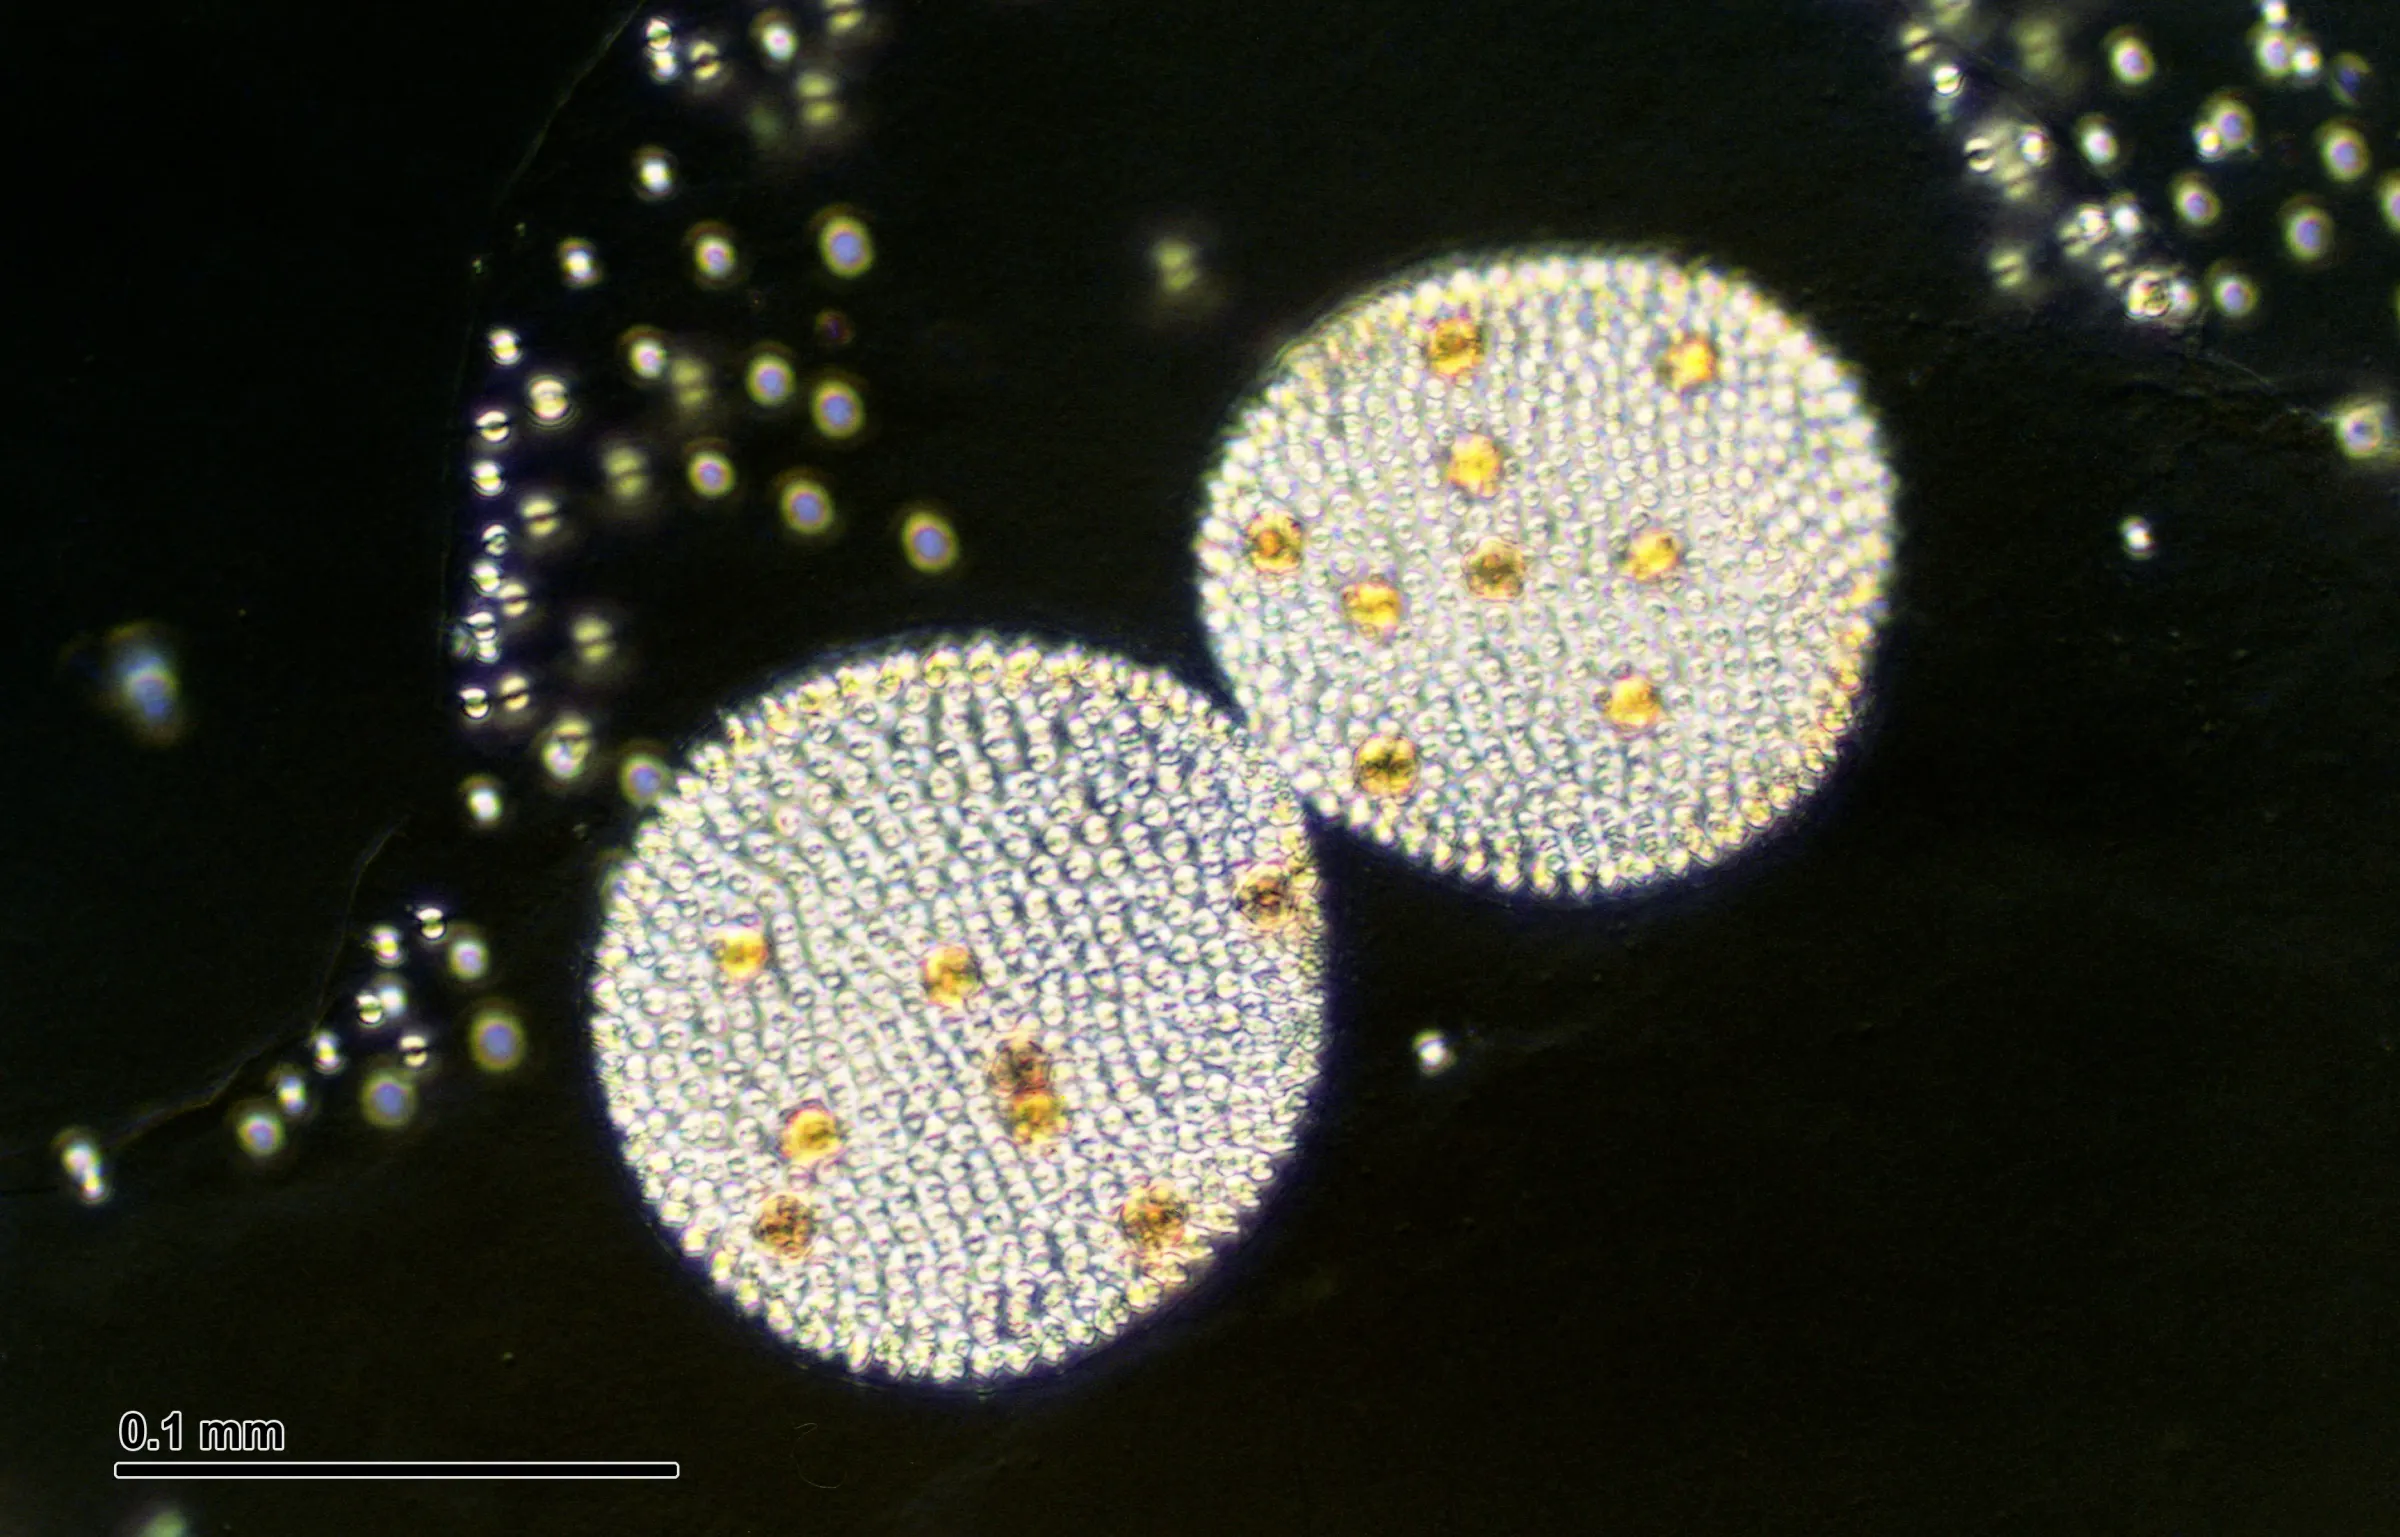
Sobre la imagen Cada esfera contiene esferas más chicas que van a ser copias de ella, construidas a partir de las instrucciones que lleva. Es un sistema vivo que se mantiene intacto y se reproduce a sí mismo al mismo tiempo, el doble punto fijo del título. Colonias del alga verde Volvox, cada una con colonias hijas adentro, vistas con un microscopio de campo oscuro. Foto: Josef Reischig, CC BY-SA 3.0, vía Wikimedia Commons.
Traducción automática del original en inglés, todavía sin revisar. Leer el original.
La escalera hasta ahora se construyó con objetos abstractos: mapas, distribuciones, operadores, demostraciones, programas y tipos. La biología es donde la abstracción se vuelve física. Un organismo vivo hace más que ocupar un estado. Es un sistema dinámico que se mantiene dentro de una región viable del espacio de estados mientras lleva una descripción que ayuda a reproducir el propio sistema.
Por eso la frase tentadora es:
la biología está en un punto fijo.
Eso es casi correcto, pero la corrección importa. La biología no está en puntos fijos. La biología está sobre atractores, y en algunos lugares está cerca de puntos críticos.
La hoja de ruta es:
- definir el espacio de estados de un cuerpo,
- explicar por qué la homeostasis es una distribución invariante atractora, no un punto congelado,
- explicar el desarrollo como un movimiento a través de un paisaje de atractores que cambia,
- separar la afirmación segura sobre los atractores biológicos de la afirmación más fuerte sobre la criticidad,
- mostrar por qué la vida es especial: combina estabilidad dinámica con autorreproducción.
El objetivo no es forzar la biología dentro de una metáfora. El objetivo es hacer una pregunta precisa:
¿qué se mantiene invariante, mediante qué transformación y en qué escala de tiempo?
#El vocabulario mínimo
Una variable de estado es una cantidad que se usa para describir la condición de un sistema. En fisiología, algunos ejemplos son la temperatura, el pH, la concentración de glucosa, los niveles hormonales, el voltaje de membrana y los niveles de expresión génica.
Homeostasis significa mantener una variable dentro de un rango viable. La temperatura corporal es el ejemplo estándar. La imagen matemática es un atractor estable: perturbás la variable y la realimentación la trae de vuelta.
Alostasis significa estabilidad a través de una regulación que cambia. El objetivo mismo se puede mover: el cortisol cambia a lo largo del día, la frecuencia cardíaca cambia con la actividad, la respuesta inmune cambia con una infección. La vida no siempre mantiene fijo un número; muchas veces mueve el punto de referencia (setpoint) mientras mantiene viable al organismo.
Realimentación (feedback) significa que la salida de un sistema afecta su entrada futura. La realimentación negativa amortigua los desvíos. La realimentación positiva los amplifica.
Disipación significa que el sistema pierde continuamente energía utilizable hacia su entorno. En el lenguaje de los sistemas dinámicos, la disipación muchas veces contrae el volumen del espacio de fases y empuja las trayectorias hacia atractores de menor dimensión.
Un estado absorbente es un estado del que, una vez alcanzado, no se puede salir. Para un linaje biológico, la muerte y la extinción cumplen ese papel.
La criticidad es el borde donde las perturbaciones ni se apagan de inmediato ni explotan sin coherencia. En la criticidad, las correlaciones se pueden extender a través de muchas escalas.
La canalización es la robustez del desarrollo. Un proceso está canalizado cuando muchas diferencias chicas en la condición inicial, en el ruido o en el entorno igual llevan al mismo resultado funcional.
La autorreproducción no es copiar materia sino copiar un sistema que contiene una descripción, y la maquinaria para interpretarla.
#El espacio de estados de un cuerpo
Un sistema dinámico necesita un espacio de estados. Para un cuerpo, eso al principio suena imposible, porque el estado completo incluiría cada molécula, célula, tejido, señal, microbio e interacción con el entorno.
Pero todo modelo elige un nivel de descripción. Si estudiás la termorregulación, un estado útil podría incluir la temperatura central, la temperatura de la piel, la tasa metabólica, la respuesta de sudoración y la temperatura ambiente. Si estudiás la regulación de la glucosa, el estado podría incluir glucosa, insulina, glucagón, reservas de glucógeno, ingesta de comida y actividad. Si estudiás el desarrollo, el estado podría ser un vector de niveles de expresión génica.
Así que un vector de estado biológico depende del modelo:
$$x_t=(\text{temperature},\text{pH},\text{glucose},\text{hormones},\text{neural activity},\ldots).$$
La dinámica son las reglas que hacen avanzar este estado:
$$x_{t+1}=F(x_t,u_t,\eta_t),$$
donde $u_t$ representa entradas como comida, luz, estrés, infección o contexto social, y $\eta_t$ representa ruido.
El organismo es viable solo en un subconjunto del espacio de estados:
$$V\subseteq X.$$
Demasiado frío, demasiado ácido, demasiado poco ATP, demasiada inflamación, demasiada excitación neuronal: estas son salidas de la viabilidad. La biología, entonces, no es solo una trayectoria a través del espacio de estados. Es una trayectoria que tiene que quedarse dentro de una región restringida mientras el entorno la sigue perturbando.
Por eso importan los atractores. Un atractor no es lenguaje decorativo. Es el objeto matemático que explica cómo un sistema puede ser perturbado y aun así volver a una región viable.
#Atractores, no puntos fijos
La homeostasis tiene forma de punto: temperatura, pH de la sangre, osmolaridad, regulación de la glucosa. Son variables en las que la variación es peligrosa, así que los lazos de realimentación vuelven contractiva la dinámica local.
Hay una forma más precisa de decir esto usando el ensayo sobre leyes de potencia. Un cuerpo vivo es ruidoso, así que el invariante correcto rara vez es un solo estado. Es una distribución sobre estados que la dinámica deja sin cambios. Es el mismo objeto que una distribución estacionaria de Markov $\pi=\pi P$, o la densidad invariante de un mapa caótico: un punto fijo del operador que empuja distribuciones enteras un paso hacia adelante. Homeostasis es el nombre biológico de una medida invariante atractora, mantenida angosta por la realimentación.
Pero gran parte de la vida no tiene forma de punto. El latido del corazón, el ritmo circadiano, las oscilaciones neuronales, el ciclo menstrual y el ciclo celular se parecen más a ciclos límite. Un ciclo límite no es un punto fijo del flujo continuo, pero sí es un punto fijo del mapa de retorno.
La afirmación honesta es:
los sistemas vivos están sobre atractores robustos: con forma de punto donde nada debería variar, con forma de ciclo donde algo tiene que variar.
El lenguaje del mapa de retorno es importante. Supongamos que un latido sigue una órbita cerrada en tiempo continuo. Elegí una sección transversal de esa órbita y registrá dónde vuelve la trayectoria después de un ciclo. Eso da un mapa discreto:
$$x_{n+1}=P(x_n).$$
El ciclo es estable cuando el mapa de retorno tiene un punto fijo atractor:
$$P(x^\star)=x^\star,\qquad |P’(x^\star)|<1.$$
Así que el teorema del punto fijo del primer ensayo no desapareció. Cambió de nivel. Un ritmo no es un punto fijo del flujo, pero sí es un punto fijo del mapa que muestrea el flujo una vez por ciclo.
Esta es la primera conexión importante con el resto de la serie. La frase ingenua “la biología está en un punto fijo” es falsa si significa “el organismo es estático”. Un cuerpo vivo nunca es estático. Respira, bombea, metaboliza, repara, aprende y envejece.
Pero la frase se vuelve verdadera en el nivel correcto:
| Fenómeno biológico | Invariante matemático |
|---|---|
| variable homeostática | punto atractor o distribución invariante angosta |
| latido o ritmo circadiano | ciclo límite estable / punto fijo de un mapa de retorno |
| destino celular | atractor de una red regulatoria |
| identidad de un tejido | cuenca mantenida por realimentación y regulación epigenética |
| reproducción | punto fijo de un lazo descripción-intérprete |
La vida no es fija porque nada cambie. La vida es fija porque algunas relaciones sobreviven al cambio continuo.
#Tres fuerzas empujan la biología hacia los atractores
Primero, la disipación. Los sistemas vivos son abiertos y disipativos. Queman energía libre y descartan entropía. La disipación contrae el volumen del espacio de fases, así que las trayectorias colapsan sobre conjuntos de menor dimensión.
Segundo, la realimentación negativa. La insulina y el glucagón, la termorregulación, los barorreflejos y muchos lazos de regulación génica son contracciones diseñadas. Alrededor de un punto de referencia viable, la biología quiere algo como:
$$|f’(x^\star)|<1.$$
Una caricatura de una sola variable deja clara la idea. Sea $x_t$ el desvío respecto de un punto de referencia, como el error de temperatura. Un controlador de realimentación negativa tiene la forma local:
$$x_{t+1}=a x_t+\eta_t,$$
donde $\eta_t$ es ruido. Si $|a|<1$, los shocks decaen geométricamente. Si $a>1$, los shocks se amplifican. Si $a<-1$, la corrección se pasa tanto que crea una oscilación inestable. La fisiología real tiene muchas dimensiones, pero la imagen local de álgebra lineal es la misma: los autovalores del jacobiano cerca del estado viable tienen que quedarse dentro del círculo unitario para la regulación en tiempo discreto, o tener parte real negativa para la regulación en tiempo continuo.
Tercero, la selección más la muerte. La muerte es un estado absorbente. Un linaje cuyas variables vitales amplifican las perturbaciones queda eliminado. No observamos todas las dinámicas posibles. Observamos el subconjunto filtrado por supervivencia que se quedó dentro de cuencas de atracción viables.
Esto es la no ergodicidad en su forma evolutiva.
El conjunto (ensemble) de organismos posibles es enorme. La mayoría de las arquitecturas no sobreviven lo suficiente como para ser muestreadas a lo largo del tiempo. El promedio temporal sobre los linajes que sobreviven no es el promedio de conjunto sobre todas las máquinas biológicas concebibles. La selección no se limita a optimizar una función objetivo; borra las trayectorias que chocan contra la barrera absorbente.
Por eso la estabilidad biológica no debería leerse como prueba de diseño en el sentido ingenieril estrecho. Muchas veces es supervivencia hecha visible.
Esto es el criterio de Kelly con guardapolvo de laboratorio. En modelos multiplicativos simples, un linaje en un entorno que fluctúa crece, a lo largo de las generaciones, no según su fitness promedio sino según la media geométrica del fitness a través de los entornos, que es el mismo objeto $\mathbb{E}[\log,\cdot]$ que el ensayo sobre ergodicidad derivó para un apostador que evita la ruina. Así que la evolución favorece la cobertura de apuestas (bet-hedging): un genotipo que baja su fitness de media aritmética para subir su media geométrica, repartiendo la germinación a lo largo de los años o diversificando su descendencia, puede desplazar a un competidor que es mejor en promedio pero que de vez en cuando se derrumba a cero. El apostador que optimiza su riqueza de largo plazo y el linaje que optimiza su supervivencia de largo plazo están resolviendo el mismo problema de crecimiento logarítmico en dominios distintos. La no ergodicidad no es una rareza de las finanzas; es la matemática de cualquier sistema que tiene que seguir multiplicándose a lo largo del tiempo sin tocar cero.
Hay un resumen útil de álgebra lineal. Cerca de un estado viable $x^\star$, aproximá la dinámica biológica por su jacobiano:
$$x_{t+1}-x^\star \approx J(x_t-x^\star).$$
Si los autovalores de $J$ están dentro del círculo unitario, las perturbaciones chicas se achican. Si un autovalor cruza hacia afuera, las perturbaciones crecen en esa dirección. Si un par complejo cruza el borde de estabilidad, pueden aparecer o desestabilizarse oscilaciones.
Es la misma historia local que la del mapa logístico y el ensayo sobre bifurcaciones. La biología agrega ruido, muchas dimensiones, retardos y parámetros que cambian, pero el primer diagnóstico es conocido: mirá el mapa linealizado y preguntate si los desvíos se contraen.
Eso también explica por qué la enfermedad muchas veces es dinámica y no solo material. Hipertensión, arritmia, desborde autoinmune, crecimiento de un cáncer, convulsiones, inflamación crónica, síndrome metabólico: en cada caso, un lazo regulatorio puede pasar de una cuenca estable a otro atractor, o perder estabilidad en una dirección que antes se contraía.
#El desarrollo como diagrama de bifurcación
Los destinos celulares se pueden entender como atractores de un sistema dinámico de regulación génica. El paisaje de Waddington es un diagrama de cuencas. Las redes booleanas aleatorias de Kauffman volvieron esto lo bastante preciso como para simularlo.
Un gradiente de morfógeno es un parámetro que se mueve despacio. A medida que el parámetro cambia, el paisaje cambia. Una cuenca progenitora se puede dividir en dos cuencas de destino comprometido.
El desarrollo es teoría de bifurcaciones con química.
En símbolos, escribí el estado de expresión génica como un vector:
$$x_t=(x_t^{(1)},\ldots,x_t^{(n)}),$$
y la actualización regulatoria como:
$$x_{t+1}=F(x_t;r),$$
donde $r$ es un parámetro del desarrollo: concentración de morfógeno, posición en el tejido, tiempo desde la fecundación o contexto de señalización. Un destino celular es un atractor de $F$. Si la química de fondo es continua en el tiempo, leé $F$ como el mapa de retorno o la actualización muestreada de la dinámica regulatoria, el mismo movimiento que usamos más arriba para los latidos y los ciclos. La diferenciación no es la célula descubriendo una etiqueta. Es la trayectoria cayendo en una cuenca a medida que $r$ cambia la forma del espacio de estados.
Canalización significa que la cuenca es ancha. El ruido, las mutaciones y las diferencias ambientales chicas no tiran a la célula de inmediato hacia el destino equivocado. En lenguaje dinámico, la selección favorece atractores con cuencas grandes y direcciones restauradoras fuertes para las funciones que tienen que ser confiables.
Un paisaje unidimensional chiquito hace visible la bifurcación.
Supongamos que el estado de una célula se resume en una sola coordenada $x$, e imaginemos un potencial:
$$V(x;r)=x^4-rx^2.$$
La célula tiende a rodar cuesta abajo:
$$\dot{x}=-\frac{dV}{dx}=-4x^3+2rx.$$
Cuando $r<0$, el potencial tiene un solo mínimo en $x=0$. Hay una cuenca. Un destino.
Cuando $r>0$, el centro se vuelve inestable y aparecen dos mínimos:
$$x=\pm\sqrt{\frac{r}{2}}.$$
Ahora hay dos cuencas. Dos destinos.
#Simulación: el paisaje de Waddington
Abrí esta simulación en Explorar →
Este no es un modelo realista del desarrollo. Es una imagen local limpia de lo que significa el paisaje de Waddington. Un parámetro cambia. La estructura de atractores cambia. Un solo valle se divide en dos. La trayectoria no elige un destino leyendo una etiqueta; cae en una cuenca o en la otra a medida que el paisaje se deforma.
En el desarrollo real, $x$ tiene muchas dimensiones. Las coordenadas son niveles de expresión, estados de la cromatina, vías de señalización, interacciones entre células y restricciones mecánicas. Pero la idea dinámica es la misma:
$$\text{cell fate}=\text{attractor of a regulatory system}.$$
Acá es donde vuelven los dos primeros ensayos. El desarrollo usa puntos fijos y bifurcaciones, pero no en el sentido de juguete de un solo número que converge. Los usa en un espacio de estados de muchas dimensiones, ruidoso y restringido por la historia.
#Criticidad
La supervivencia quiere cuencas profundas. La computación quiere sensibilidad.
Las variables que no deben variar están clavadas en el fondo de los atractores. Las variables que tienen que procesar información muchas veces se mantienen cerca de la criticidad, donde las perturbaciones se propagan sin apagarse de inmediato y sin destruir la coherencia.
Esta es la idea del borde del caos (edge of chaos) en lenguaje biológico:
lo bastante estable para persistir, lo bastante sensible para computar.
Las avalanchas neuronales, las redes de regulación génica, los repertorios inmunes y el comportamiento colectivo pertenecen todos acá. Beggs y Plenz, Kauffman, Bialek, Langton y Bak están todos dando vueltas alrededor de la misma forma desde lados distintos.
En la criticidad, un sistema no tiene una única escala característica. Las perturbaciones pueden quedarse locales o pueden recorrer todo el sistema. Por debajo de la criticidad, las señales se apagan demasiado rápido. Por encima de la criticidad, la coherencia se destruye. Cerca de la criticidad, el sistema puede almacenar información, transmitir información y transformar información.
Este es el significado útil del borde del caos. No el desorden máximo. No la explosión permanente. La región útil es el borde donde la estructura persiste sin dejar de responder.
Hay varias versiones de la afirmación, y no conviene mezclarlas sin cuidado.
También hay acá un debate científico abierto. La criticidad es un marco explicativo poderoso, pero no es un solvente universal. Una ley de potencia puede venir de artefactos de muestreo, de mezclas de variables ocultas, de optimización bajo restricciones, de conexión preferencial (preferential attachment) o de heterogeneidad común y corriente. Las correlaciones largas pueden ser efectos de tamaño finito. Las avalanchas neuronales pueden depender de la escala de medición y del umbral elegido. Así que la carga no es simplemente señalar una distribución ancha y decir “crítico”. La carga es identificar el mecanismo, el parámetro de control, el rango de escalamiento y las explicaciones alternativas.
#Afirmación 1: algunos sistemas biológicos muestran señales de criticidad
Esta es la afirmación más empírica, y la más segura. Algunos sistemas biológicos muestran las mediciones de manual de un punto crítico: avalanchas con ley de potencia, longitudes de correlación que crecen con el sistema, fluctuaciones libres de escala y cambios bruscos en la capacidad de respuesta. Que estas señales estén presentes es un dato. Lo que significan es la parte discutida, y la discusión se vuelve más aguda con cada afirmación siguiente.
Los sistemas neuronales son el ejemplo más famoso. Beggs y Plenz reportaron avalanchas neuronales cuya distribución de tamaños se acerca al exponente $-3/2$ de un proceso de ramificación crítico. En ese modelo, el número clave es la razón de ramificación. Si es menor que uno, la actividad se apaga. Si es mayor que uno, la actividad explota. Cerca de uno, la actividad se propaga sin desaparecer ni saturarse de inmediato. Ese es exactamente el borde crítico.
El modelo de juguete del proceso de ramificación es:
$$Z_{t+1}=\sum_{i=1}^{Z_t} X_i,$$
donde $Z_t$ es la cantidad de unidades activas y $X_i$ es la cantidad de descendientes que dispara la unidad activa $i$. La razón de ramificación es:
$$\sigma=\mathbb{E}[X_i].$$
Si $\sigma<1$, la actividad se extingue. Si $\sigma>1$, la actividad puede desbocarse. En $\sigma=1$, los tamaños de las avalanchas siguen una ley de potencia en el modelo ideal. Esta es la razón matemática más simple por la que la dinámica neuronal crítica es interesante: la criticidad maximiza la propagación sin un desborde inmediato.
#Simulación: criticidad de ramificación
Abrí esta simulación en Explorar →
Los sistemas de regulación génica dan un segundo ejemplo. Los modelos de redes booleanas de Kauffman tienen una perilla de control simple: de cuántos otros genes depende cada gen. Con muy pocas dependencias, el sistema se congela. Con demasiadas, las perturbaciones se esparcen de forma caótica. Alrededor del régimen crítico, que en el modelo de juguete muchas veces se resume como una conectividad cercana a $K\approx 2$, la red puede seguir estructurada mientras se adapta.
El comportamiento colectivo da un tercer ejemplo. Bialek y sus colaboradores argumentaron que las bandadas de estorninos están cerca de un punto crítico de tipo ferromagnético: las correlaciones de dirección se pueden extender por toda la bandada en vez de apagarse a una distancia fija. La bandada se comporta menos como una multitud de pájaros independientes y más como un sistema correlacionado cuya longitud de correlación escala con su tamaño.
El sistema inmune da un cuarto ejemplo. La afinidad de los anticuerpos, la diversidad de receptores de células T y las estadísticas del repertorio inmune muchas veces muestran una estructura ancha y de cola pesada. La afirmación prudente no es que cada una de esas distribuciones pruebe un punto crítico. La afirmación útil es que la adaptación inmune vive en el mismo compromiso: suficiente estabilidad para recordar, suficiente sensibilidad para responder a perturbaciones desconocidas.
#Afirmación 2: la criticidad es útil para computar
Esta es una afirmación de modelo. Dice que los sistemas cerca del borde entre orden y caos pueden procesar información mejor que los sistemas metidos a fondo en cualquiera de los dos regímenes.
Langton hizo precisa la versión computacional para los autómatas celulares. Su parámetro $\lambda$ lleva a los sistemas desde un orden congelado hasta un desorden caótico. La región computacionalmente interesante está cerca del borde, donde la información se puede almacenar, transmitir y transformar. Esta es la versión teórica más limpia de la intuición biológica: el borde del caos no es lenguaje estético; es donde la computación se vuelve posible.
La intuición es simple. En un sistema congelado, las perturbaciones desaparecen demasiado rápido. Nada se propaga. En un sistema caótico, las perturbaciones se esparcen demasiado rápido y destruyen la estructura utilizable. Cerca del borde, las señales pueden viajar, interactuar y seguir siendo interpretables.
En términos lineales, pensá otra vez en los autovalores. Si todas las direcciones se contraen fuerte, el sistema olvida demasiado. Si muchas direcciones se expanden fuerte, el sistema se vuelve inestable. Cerca de la estabilidad marginal, donde las direcciones importantes están cerca del borde, las perturbaciones pueden persistir lo suficiente como para llevar información.
Eso no significa que toda variable deba ser marginal. El pH central no debería vivir en el borde del caos. Las variables neuronales e inmunes pueden hacerlo. El cuerpo no es un único régimen dinámico. Es una jerarquía: algunas variables están clavadas, algunas oscilan, algunas se adaptan y algunas computan cerca de bordes críticos.
#Afirmación 3: la evolución podría autoorganizarse cerca de la criticidad
Esta es la afirmación más amplia, y la que hay que mantener a cierta distancia. Dice que la evolución no solo produce atractores locales sino que tiende activamente a estacionar los sistemas adaptativos cerca de puntos críticos, porque ahí es donde las grandes reorganizaciones siguen siendo posibles.
La imagen es realmente atractiva. En la pila de arena de Bak, la pila no está esperando una última avalancha final; mantiene una pendiente sobre la que siguen siendo posibles avalanchas de todos los tamaños. Leé la historia evolutiva en ese lenguaje y las grandes transiciones (la química autocatalítica, de procariota a eucariota, de unicelular a multicelular, de asexual a sexual, de organismo a superorganismo) parecen avalanchas en un paisaje crítico que se mantiene a sí mismo. El equilibrio puntuado entra en el mismo marco: la larga estasis es el sistema descansando en una cuenca, y las puntuaciones son saltos entre cuencas. Los conjuntos autocatalíticos de Kauffman aportan un mecanismo candidato para uno de esos saltos. Por debajo de un umbral de densidad catalítica hay química pero no hay una clausura que se sostenga a sí misma; por encima, una red reflexivamente autocatalítica se mantiene a sí misma, una transición de fase hacia un nuevo atractor de organización.
Pero atractivo no es lo mismo que establecido, y este es el lugar donde la serie tiene más chances de gastar de más su credibilidad. Este peldaño se apoya más en la analogía que en la medición, así que lo honesto es nombrar exactamente dónde la evidencia es floja en vez de suavizar cada frase alrededor:
- El exponente de las avalanchas neuronales está en discusión. Submuestrear una red que en realidad no es crítica puede fabricar una ley de potencia limpia de $-3/2$, y algunos registros corticales se ajustan mejor a un régimen levemente subcrítico y reverberante que a uno crítico.
- $K\approx 2$ es la conectividad crítica de una red booleana aleatoria de juguete. Que las redes reales de regulación génica estén en ese borde es otra afirmación, con un respaldo mucho más débil que lo que sugiere ese número prolijo.
- La criticidad autoorganizada como teoría de la evolución, la línea de Bak-Sneppen, es en gran parte una metáfora. El modelo muestra que una regla de juguete de reemplazo por fitness puede autoorganizarse hacia la criticidad; no muestra que la evolución real, con ecología, desarrollo, estructura poblacional y entornos que cambian, haga lo mismo. Su anclaje en el registro fósil y genómico es por lo tanto mucho más fino de lo que el modelo de juguete hace sentir.
- Las correlaciones libres de escala medidas en bandadas de estorninos son reales y llamativas; leerlas específicamente como criticidad, y no como uno de varios modelos que producen correlaciones largas, es el paso que está en discusión.
Nada de esto es una refutación. La criticidad sigue siendo una lente productiva, y las afirmaciones 1 y 2 se sostienen solas. Pero “la evolución apunta al borde del caos” es una hipótesis disfrazada de ley, y conviene llevar ese disfraz con soltura.
Lo que sobrevive a cada una de estas dudas es una afirmación más débil y más sólida, y es la que realmente vale la pena sostener:
los sistemas biológicos muchas veces están organizados de modo que las variables vitales están en cuencas robustas, mientras que las variables adaptativas e informacionales están más cerca de la estabilidad marginal.
Esa afirmación sobre la asignación no pide ningún compromiso con la criticidad autoorganizada como ley biológica. Solo necesita lo que los ensayos anteriores ya se ganaron: la realimentación hace que algunas direcciones se contraigan fuerte, y la selección borra los linajes cuyas variables vitales no lo hacen. También descarta la versión descuidada,
la vida es caos.
La vida no es caos. El caos destruye un organismo en el momento en que llega a la variable equivocada. La afirmación defendible es solo que los sistemas vivos asignan estabilidad y sensibilidad de manera distinta a través de las escalas.
#¿Qué es lo que queda fijo?
A esta altura la palabra “fijo” puede confundir.
El objeto fijo no es un organismo congelado. Es un patrón de recurrencia a través de escalas de tiempo.
En la escala fisiológica rápida, las variables vuelven a rangos viables:
$$x_t\in V.$$
En la escala del desarrollo, las células caen en cuencas de destino reproducibles:
$$x_{t+1}=F(x_t;r)\longrightarrow A_r.$$
En la escala evolutiva, los linajes que salen de la viabilidad desaparecen:
$$\text{trajectory hits death}\Rightarrow\text{removed from future sampling}.$$
En la escala reproductiva, el lazo descripción-intérprete se repite:
$$C(G,E)\longrightarrow (C’,G’).$$
Son invariantes distintos. Confundirlos vuelve vaga la tesis. Mantenerlos separados la vuelve más fuerte: la biología no es un punto fijo, sino una pila de estructuras invariantes que operan en escalas de tiempo distintas.
#La vida como doble punto fijo
La vida es donde se encuentran los dos motores.
El Motor A arrastra al organismo hacia atractores dinámicos: homeostasis, ritmos, desarrollo, identidad de los tejidos.
El Motor B aparece porque el ADN es una autodescripción incrustada dentro del sistema que la lee y la copia. Una célula contiene a la vez una descripción y la maquinaria que interpreta esa descripción.
En forma aproximada:
$$\operatorname{eval}(\text{genome}) \approx \text{organism containing genome}.$$
Esa no es una metáfora al pasar. Es la versión biológica del problema de la autorreproducción que estudió von Neumann: cinta más constructor universal. El genoma no es el organismo, así como un programa no es la máquina que lo ejecuta. Pero el organismo contiene maquinaria que lee el genoma, construye las proteínas que mantienen esa maquinaria y reproduce el genoma en el sistema siguiente.
Un esquema más cuidadoso es:
$$C(G,E)\longrightarrow (C’,G’),$$
donde $G$ es el genoma, $C$ es la maquinaria celular y $E$ es el entorno. La reproducción tiene éxito cuando:
$$G’\approx G$$
y la nueva maquinaria $C’$ puede volver a leer $G’$. El punto fijo, entonces, no es un objeto estático. Es un lazo reproductivo cerrado: la descripción produce el intérprete, el intérprete copia la descripción, y el sistema resultante puede repetir el lazo.
La vida es un sistema que se describe a sí mismo y que además es un atractor estable de su propia dinámica.
Ese es el doble punto fijo:
- Dinámicamente, el organismo sobrevive quedándose dentro de atractores viables.
- Recursivamente, el organismo se reproduce llevando una descripción codificada que participa en la construcción de otro sistema que lleva esa descripción.
El hecho profundo sobre la vida no es solo que sea estable. Muchos sistemas muertos son estables. El hecho profundo es que la estabilidad y la autodescripción coinciden.
La advertencia es importante. El ADN no es un plano en el sentido ingenuo. Un plano lo puede leer un constructor externo. Un genoma lo lee una maquinaria que en parte se produce bajo control genómico y en parte se hereda de la célula anterior. El intérprete no está afuera del sistema.
Por eso la mejor analogía no es un plano sino un lazo parecido a un quine.
Un quine funciona porque el código y el intérprete cooperan. Un genoma funciona porque el genoma, los ribosomas, las membranas, las enzimas, la arquitectura celular y el entorno forman un lazo lo bastante cerrado como para producir otro lazo del mismo tipo.
Acá es donde la biología es más profunda que la estabilidad dinámica común. Un remolino es un atractor, pero no codifica una descripción que ayude a producir remolinos futuros. Un cristal puede replicar estructura, pero no contiene un programa interpretado internamente para construir la maquinaria que continúa el proceso. La vida combina:
- estructura de atractores,
- metabolismo y disipación,
- una descripción heredada,
- un intérprete para esa descripción,
- la reproducción tanto de la descripción como del intérprete.
Esa combinación es la razón por la que la vida va después del ensayo sobre autorreferencia. Es más que un ejemplo del Motor A: es el primer sistema del mundo real en la serie donde el Motor A y el Motor B cooperan de manera visible.
La afirmación final más precisa es:
un sistema vivo es un atractor disipativo que lleva una descripción codificada que participa en la reproducción de otro atractor disipativo del mismo tipo.
La duodécima lección:
La vida es un doble punto fijo: un atractor disipativo que además codifica y reproduce la descripción necesaria para reconstruirse a sí mismo.
Esa frase es menos romántica que “la vida es un punto fijo”, pero está más cerca de la matemática.
El resumen invariante de este ensayo es:
$$ x_t\in V $$
para las variables fisiológicas viables rápidas;
$$ x_{t+1}=F(x_t;r)\longrightarrow A_r $$
para el desarrollo y las cuencas de destino; y
$$ C(G,E)\longrightarrow(C’,G’),\qquad G’\approx G $$
para la reproducción. La vida es donde esos invariantes conviven: un cuerpo tiene que quedarse en atractores viables mientras lleva una descripción interna que ayuda a producir otro cuerpo viable.
#Lecturas recomendadas
- Stuart Kauffman, The Origins of Order. Atractores, redes booleanas, autocatálisis y autoorganización en biología.
- C. H. Waddington, The Strategy of the Genes. El origen de la metáfora del paisaje del desarrollo.
- John Beggs y Dietmar Plenz, Neuronal avalanches in neocortical circuits (2003). La referencia sobre criticidad neuronal.
- William Bialek et al., Statistical mechanics for natural flocks of birds (2012). Correlaciones libres de escala en el comportamiento colectivo.
- John von Neumann, Theory of Self-Reproducing Automata. El antepasado computacional de la historia del genoma como descripción.
- Per Bak, How Nature Works. La vía de entrada divulgativa a la criticidad autoorganizada.
De la serie Cuando las reglas se repiten: la escalera del punto fijo.
Escrito con un LLM, como todo lo de este sitio. Las ideas y los errores son míos. Cómo escribo.